Le modèle de Raup permet de représenter les différentes formes que peut prendre une coquille à croissance spiralée à partir d’un petit nombre de paramètres géométriques. Il ne cherche donc pas à décrire une espèce particulière, mais à définir un espace des formes théoriquement possibles.
Raup reprend le modèle de croissance fondé sur une spirale logarithmique, développé notamment depuis Moseley et repris par D’Arcy Thompson. Mais il le formalise en introduisant quatre paramètres qui permettent de construire mathématiquement une coquille : S, la forme de la section du tube générateur ; W, le taux d’expansion du tour ; D, la position du tube par rapport à l’axe de croissance ; et T, le taux de translation suivant cet axe.
Ces paramètres ne correspondent pas à quatre « mesures » prises directement sur une coquille réelle. Ce sont des paramètres de construction. En faisant varier l’un d’eux tout en maintenant les autres constants, on obtient une série de coquilles dont la morphologie générale se transforme progressivement.
Dans son modèle proposé en 1966, quatre paramètres jouent un rôle essentiel :
- W (Whorl expansion rate) : Le paramètre W correspond au taux d’expansion du tour à chaque révolution. Il mesure dans quelle proportion les dimensions de la coquille augmentent d’un tour au suivant. Une faible valeur de W produit une coquille dont les tours restent relativement proches en taille ; une valeur plus élevée conduit à une augmentation beaucoup plus rapide de leur diamètre.
- D (Distance from the coiling axis) : Le paramètre D définit la position de la courbe génératrice par rapport à l’axe d’enroulement. Lorsque D = 0, cette courbe est au contact de l’axe ; lorsque D augmente, la coquille devient plus ouverte autour de son axe.
- S (Shape of the generating curve) : Le paramètre S décrit la forme de la section de la coquille, ou plus précisément de la courbe génératrice, qui correspond à la section du tour de la coquille. Une courbe circulaire, elliptique ou d’une autre forme modifie l’aspect général de la coquille.
- T (Translation rate) : Le paramètre T définit le taux de déplacement le long de l’axe vertical à chaque rotation. Raup décrit T=0 comme le cas des coquilles planispirales, c’est-à-dire que la spirale reste dans un même plan. Lorsque T augmente, la croissance s’effectue progressivement suivant l’axe et la coquille prend une forme de plus en plus hélicoïdale
Raup précise cependant que ces quatre paramètres ne suffisent pas à caractériser toute la morphologie du mollusque : le modèle laisse notamment de côté l’ornementation, les lignes de croissance, la structure interne ou l’épaisseur de la coquille.
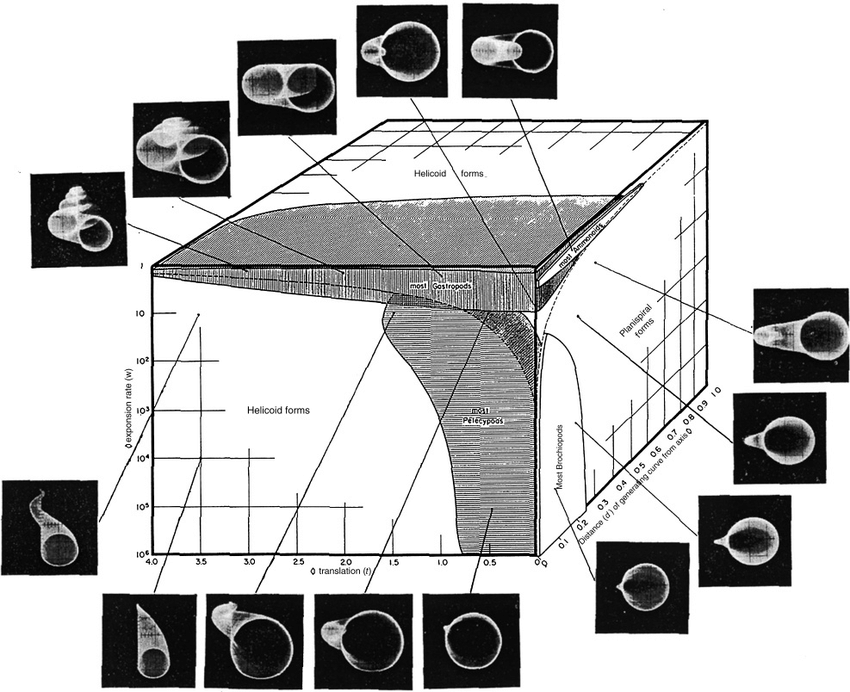
Dans cette représentation en trois dimensions, S est maintenu constant ; les trois axes correspondent donc à W, D et T.
Ces quatre paramètres permettent de construire une infinité de formes théoriques. Pour visualiser cette diversité, Raup fait varier simultanément trois paramètres et représente les résultats sous la forme d’un bloc tridimensionnel : chaque position dans ce bloc correspond à une combinaison particulière de paramètres et donc à une forme de coquille particulière. Chaque déplacement dans le bloc correspond à une modification de la forme de la coquille.
C’est ce bloc qui constitue ce que l’on appellera ensuite un morphospace, c’est-à-dire un « espace des formes ».
Il faut toutefois préciser que le morphospace n’est pas, à proprement parler, un espace où toutes les coquilles naturelles seraient réparties. Il représente d’abord le spectre des formes géométriquement possibles dans les limites du modèle et de ses quatre paramètres.
Le morphospace permet donc de comparer deux choses :
- les formes que la géométrie permet d’imaginer ;
- les formes que l’on rencontre réellement chez les organismes.
On observe que les régions occupées par les coquilles naturelles ne remplissent pas tout l’espace. C’est la découverte majeure de Raup : le cube est presque vide ! La nature n’utilise qu’une toute petite partie des formes théoriquement possibles. Les zones sombres et légendées montrent où se regroupent les vrais animaux.
Cette constatation est l’un des intérêts majeurs du modèle. Elle permet de poser une question nouvelle : pourquoi certaines formes théoriquement possibles sont-elles fréquentes dans la nature, alors que d’autres ne sont jamais ou presque jamais réalisées ?
Les petites images autour
Les photos tout autour du cube montrent des simulations par ordinateur de ce à quoi ressemble la coquille si l’on se place à cet endroit précis du cube.
Il faut imaginer que les flèches associées à chaque photos pénètrent à l’intérieur du cube.
On y voit des coquilles plates, des coquilles spiralées, et même des formes qui n’existent pas dans la nature.
La zone « most Gastropods »
Les Gastropodes occupent principalement la partie supérieure du cube, correspondant aux faibles valeurs de W (taux d’expansion du tour à chaque révolution). Dans cette zone, les tours ont tendance à se recouvrir, ce qui est une caractéristique fréquente des coquilles univalves. Lorsque T augmente, la coquille devient plus élevée et plus hélicoïdale.
- Si W est trop grand (comme les bivalves tout en bas du cube), l’ouverture de la coquille grandit vite : le tube devient un cône géant et très évasé après seulement un ou deux tours.
- Un W modéré permet de créer un long tube qui grandit lentement et régulièrement. Le gastéropode peut ainsi fabriquer de nombreux tours de spire.
Dans le cube, la bande est allongée parce que les différents genres de gastéropodes font varier le paramètre (T) (la translation vers le bas), tandis que les autres paramètres restent presque fixes :
- Si la translation T est faible : La coquille est plutôt plate.
- Si la translation T est forte : La coquille s’étire vers le bas en une spirale.
En résumé, cette zone du cube représente le résultat de l’évolution pour les gastéropodes : la croissance selon l’axe d’enroulement permet notamment de construire une coquille plus haute tout en conservant un enroulement compact.
La zone « most Pelecypods »
Les caractéristiques des Pelecypods (Bivalves ) sont : une très forte expansion du dernier « tour » et une ouverture très importante.
La zone « most Pelecypods » occupe un petit domaine très compact situé tout en bas, complètement à droite, là où T est faible et W très élevé. La zone des bivalves correspond à des valeurs élevées de W : la coquille s’élargit donc très rapidement et des valeurs de T faibles.
Raup indique bien que les Pélécypodes ont des valeurs de W en moyenne supérieures à celles des univalves, mais il explique surtout qu’ils sont confinés principalement à une région de faible translation. Et surtout, ils n’occupent pas toute la région géométriquement compatible avec l’absence de recouvrement.
Chez un bivalve, on ne cherche pas à fabriquer une longue coquille tubulaire dans laquelle l’animal se déplace comme un gastéropode. Les deux valves doivent au contraire pouvoir s’ouvrir et se fermer, tout en laissant suffisamment de place au corps.
Pour qu’une coquille puisse fonctionner comme une coquille à deux valves articulées, les tours ne peuvent pas s’enrouler les uns sur les autres de la même manière que dans certaines coquilles univalves. La nécessité de conserver une charnière fonctionnelle impose donc des contraintes géométriques. Les bivalves et les brachiopodes occupent ainsi une région particulière de l’espace des formes, distincte de celle occupée par les gastéropodes et les ammonoïdes.
Pourquoi tout en bas ? (Un taux d’expansion (W) élevé
Chez un bivalve, la coquille se développe sous la forme de deux valves distinctes (gauche et droite) reliées par une charnière.
- Pour que l’animal puisse s’ouvrir et se fermer efficacement, chaque valve doit s’élargir de manière exponentielle en seulement une fraction de tour (généralement moins d’un demi-tour de spire).
- Un \(W\) maximal permet à l’ouverture de grandir en taille dès le départ. En quelques millimètres de croissance, le tube initial se transforme en une large surface plane ou légèrement bombée : la valve. Si le taux d’expansion était faible (comme chez l’escargot), l’animal fabriquerait un long tube étroit dans lequel ses deux organes de filtration ne pourraient jamais tenir, et il serait impossible de créer une large ligne droite pour la charnière.
- Pourquoi sans translation ? (T = 0))
La translation \(T\) est le paramètre qui étire la spirale le long d’un axe vertical (comme une vis).
- Si un bivalve avait une translation \(T\) supérieure à zéro, ses valves s’enrouleraient en hélice, l’une se décalant vers le haut et l’autre vers le bas.
- La conséquence biologique serait fatale : la ligne droite de la charnière se tordrait en hélice. Les deux valves ne pourraient plus s’articuler mécaniquement, rendant l’ouverture et la fermeture de la coquille structurellement impossibles. Pour qu’une charnière rigide fonctionne, la croissance doit être parfaitement bidimensionnelle. L’évolution impose donc strictement (T = 0).
- Pourquoi complètement à droite ? (Une distance à l’axe (D = 0) ou très faible)
Le paramètre \(D\) mesure l’éloignement de l’ouverture par rapport à l’axe central (la création d’un trou au milieu).
- Les bivalves ont besoin que le point de départ de leur croissance (le crochet ou umbo de la coquille) reste le point d’ancrage fixe de la charnière.
- L’ouverture doit rester collée à ce point d’origine tout au long de la vie de l’animal. Si \(D\) augmentait, les valves s’éloigneraient du centre en grandissant, créant un espace vide entre elles au niveau du dos de l’animal, ce qui briserait la connexion physique de la charnière et laisserait les organes internes sans protection.
En résumé :
Le mode de vie d’un pélécypode (un animal benthique, souvent fouisseur ou fixé, qui filtre l’eau en entrebâillant deux pièces rigides) impose une mécanique bivalve. Cette mécanique exige une croissance plane (\(T=0\)), une charnière fixe (\(D=0\)) et un élargissement immédiat des parois (\(W\) maximum).
- Les Brachiopodes
Visuellement, un brachiopode ressemble à une palourde ou à une coquille Saint-Jacques. Pourtant, ces animaux n’ont aucun lien de parenté direct avec les mollusques. C’est un cas d’évolution convergente : face aux mêmes contraintes de vie, la nature a réutilisé la même recette géométrique.
Dans le cube de Raup, ils partagent presque exactement le même coin que les pélécypodes : tout en bas, à l’extrême droite.
- Expansion W maximale : Pour fabriquer deux valves plates qui s’ouvrent, ils ont besoin d’une croissance ultra-rapide en un demi-tour.
- Translation T = 0 : Une croissance parfaitement plane est obligatoire pour que la charnière reste droite et fonctionnelle.
La nuance subtile qui les sépare des bivalves :
Si vous regardez de très près le cube de Raup, la zone des brachiopodes est encore plus serrée et collée contre le bord droit D=0 que celle des bivalves.
- Chez les bivalves (mollusques) : Les deux valves (gauche et droite) sont généralement des images miroirs parfaites l’une de l’autre.
- Chez les brachiopodes : Les deux valves (ventrale et dorsale) sont asymétriques. La valve ventrale possède souvent un petit trou au niveau du crochet pour laisser passer un pied charnu (le pédoncule) qui fixe l’animal au rocher. Pour que ce système d’ancrage fonctionne sans sectionner le tissu de l’animal, la géométrie du crochet doit être d’une précision millimétrique. L’évolution a verrouillé leur paramètre \(D\) rigoureusement à 0 : l’ouverture doit frôler l’axe central en permanence, interdisant le moindre millimètre de vide au cœur de la coquille.
La zone « most ammonoïds »
Dans le graphique original de David M. Raup (1966), la zone qui regroupe les ammonites et les nautiles est légendée différemment :
- « Planispiral forms » (formes planispiralées) : C’est le terme géométrique général utilisé pour désigner la face du cube où la translation est nulle (T=0). Les ammonites et les nautiles appartiennent tous les deux à cette grande catégorie géométrique.
« Most Ammonoids » (la plupart des ammonoïdes) : cette zone ombrée correspond aux ammonites sous classe de l’embranchement des mollusques.
Dans le cube de Raup, les ammonites et les nautiles se situent en haut de la face latérale droite, c’est-à-dire là où la translation est rigoureusement nulle T = 0, où le taux d’expansion W est modéré (ni trop grand comme les bivalves, ni trop faible comme certains gastéropodes) et où la distance D par rapport au centre est faible.
Voici le décryptage de leur équilibre géométrique :
- Une translation T = 0
T = 0 correspond à l’enroulement planispiralé, caractéristique des coquilles externes des ammonites et des nautiles.
Une croissance à plat T=0 garantit une symétrie bilatérale parfaite (gauche-droite)
- Un taux d’expansion W modéré
C’est ici qu’ils se séparent des bivalves. Les ammonites et les nautiles n’ont pas un W important ; leur tube s’élargit régulièrement à chaque tour.
- Une distance par rapport au centre D faible
D, combiné à W, contribue à déterminer si les tours se recouvrent fortement (forme involute) ou restent largement visibles (forme évolute).
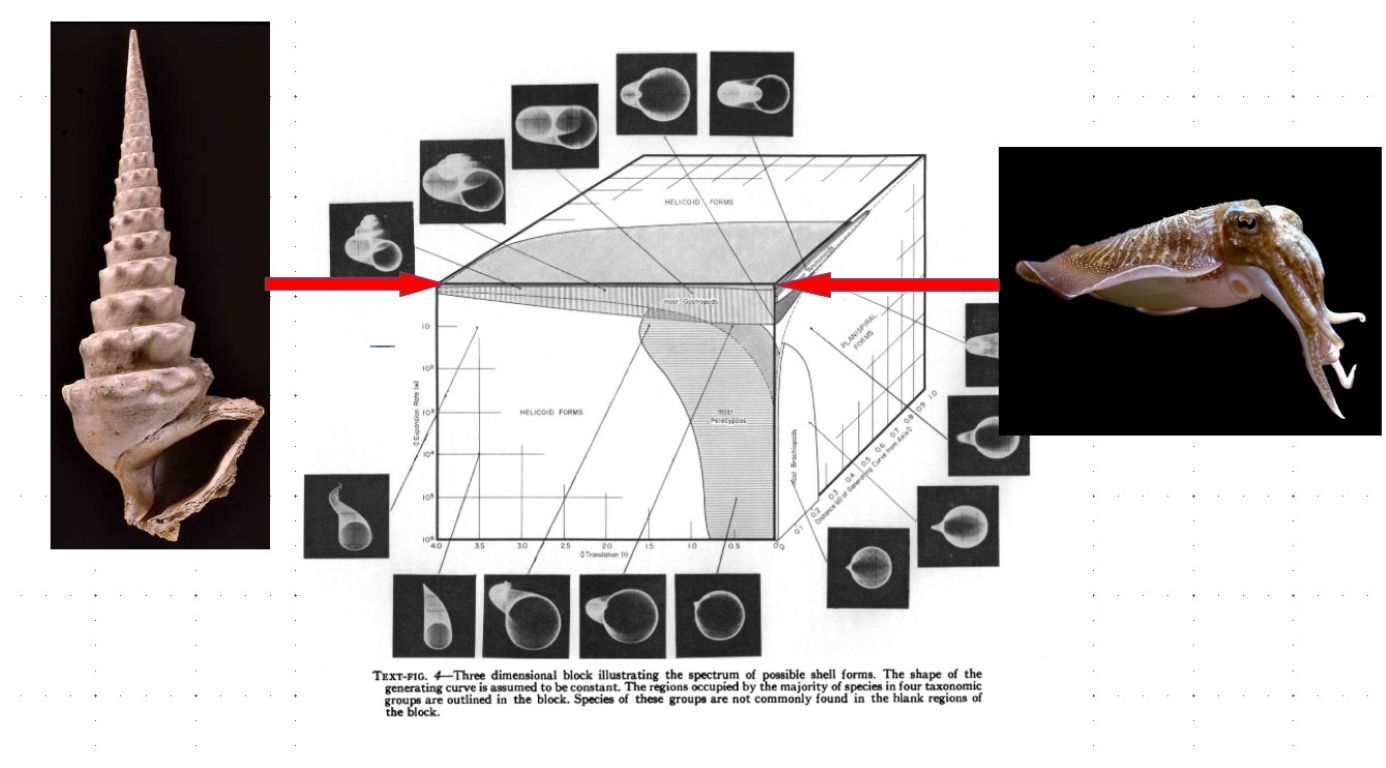
Voilà une coquille fossile de Cerithium giganteum Lamarck, 1804 et une Sepia officialis Linnaeus, 1758 actuelle. Maintenant que nous avons compris les quatre paramètres de Raup W, D, S, T essayons de les positionner dans le Morphospace de Raup.
-
Extrapolation pour le Cerithium giganteum Lamarck, 1804 (le campanile)
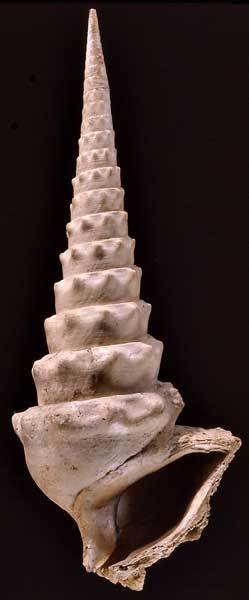
Dans le morphospace tridimensionnel de Raup, sa coquille en forme de vis allongée le situerait tout en haut, vers la gauche de la bande des gastéropodes. Ses 3 paramètres ont des valeurs extrêmes :
Sa forme très allongée suggère :
- Une faible expansion des tours (W): À chaque tour de spire complet, le diamètre de l’ouverture ne grandit que très peu.
- Une forte translation le long de l’axe (T): pour étirer une coquille sur 70 cm de long tout en gardant une ouverture étroite.
- Une faible distance à l’axe (D) . Le Campanile possède une columelle centrale autour de laquelle tous les tours s’enroulent de manière très serrée.
-
-
Extrapolation pour Sepia officionalis Linnaeus, 1758 : quand la seiche sort du modèle
-
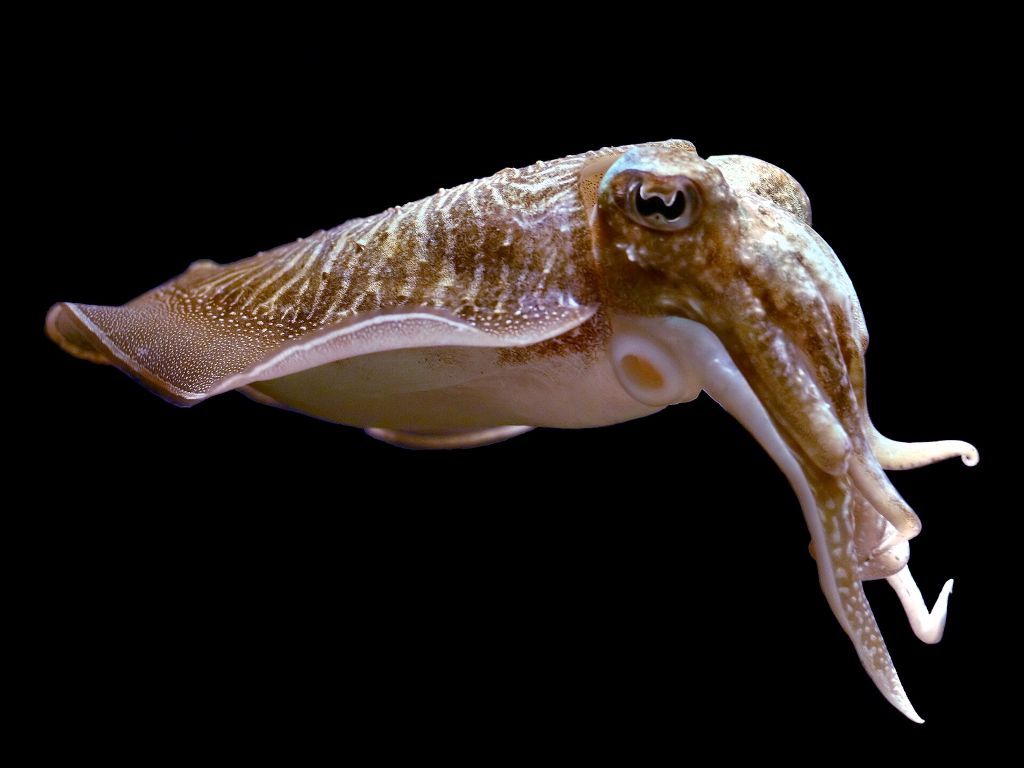
L’os de seiche, ou sépion, pose une question intéressante au modèle de Raup.
Pour situer la seiche dans le morphospace, il faut faire un formidable saut évolutif. La seiche (Sepia) sous-classe des céphalopodes a internalisé sa coquille.
Ce que l’on appelle vulgairement l’« os de seiche » (ou sépion) est en réalité le descendant direct de la coquille enroulée de l’ammonite ou du nautile. Mais au lieu de grandir autour de l’animal, cette coquille s’est aplatie et s’est retrouvée à l’intérieur de l’animal, constituée d’une centaine de micro-loges remplies de gaz pour flotter, séparées par des cloisons.
Cette structure appartient à l’histoire évolutive des coquilles de céphalopodes, mais elle ne correspond plus à une coquille spiralée que l’on pourrait décrire simplement en faisant varier les paramètres W, D et T.
Il serait tentant d’imaginer que le taux d’expansion W est devenu extrêmement élevé, jusqu’à transformer le tube en une plaque. Mais ce serait une extrapolation : le paramètre W décrit l’agrandissement d’une coquille enroulée, et non la construction d’une structure interne aplatie.
La seiche montre ainsi que le modèle de Raup est puissant, mais qu’il possède un domaine d’application précis. Il permet de comprendre une grande diversité de coquilles spiralées ; il ne suffit pas à décrire toutes les transformations évolutives de la coquille des mollusques.
Le cas particulier de la seiche
L’os de seiche présente une forme aplatie qui peut évoquer, à première vue, l’expansion importante associée à des valeurs élevées de W dans le morphospace de Raup. On peut faire un rapprochement avec certaines coquilles de bivalves, dont les valves s’élargissent fortement au cours de la croissance.
Cette ressemblance est suggestive : dans les deux cas, on observe une structure minéralisée qui s’étend largement plutôt que de former une coquille étroite et fortement enroulée. Mais il ne faut pas confondre cette analogie avec une équivalence géométrique. Chez les bivalves, W intervient dans la description d’une coquille à deux valves ; chez la seiche, l’os est une structure interne constituée de loges successives. Le paramètre W ne décrit donc pas directement sa forme.
L’os de seiche permet ainsi de prolonger la réflexion de Raup : une même intuition — l’expansion de la structure au cours de la croissance — peut aider à comparer des formes très différentes, même lorsque le modèle géométrique initial ne suffit plus à les décrire complètement.
L’os de seiche nous invite donc à élargir la question : comment une structure minéralisée, initialement associée à une coquille externe, a-t-elle pu évoluer vers un organe interne jouant notamment un rôle dans la flottabilité ?
Ses paramètres géométriques s’analysent ainsi :
- Sur l’axe de la translation : T = 0
Comme les nautiles et les ammonites, la seiche conserve une croissance parfaitement plane.
- Sur l’axe de l’expansion : W tend vers l’infini
- Chez un nautile, le tube s’élargit sagement.
- Chez la seiche, le taux d’expansion (W) est si important que l’ouverture de la coquille ne forme plus un tube : elle s’ouvre complètement à plat. À chaque micro-étape de croissance, la coquille s’élargit de manière rectiligne. Mathématiquement, c’est comme si le curseur W avait été poussé à une valeur infinie, transformant la spirale en une plaque calcaire ovale et plate.
- Sur l’axe de la distance : D = 0
Les cloisons internes de l’os de seiche (qui forment la centaines de micro-chambres remplies de gaz pour flotter) s’empilent directement les unes sur les autres depuis le point d’origine (la pointe arrière de l’os, appelée le rostre). Il n’y a absolument aucun trou central (D = 0).
La seiche est l’exemple parfait de l’animal qui a quitté le morphospace des coquilles enroulées pour inventer son propre espace de forme.
-
Genre de forme de coquille possible
Modélisation suivant Raup en utilisant les valeurs suivantes pour les paramètres W=2, D=0,3, S=1, T=2.
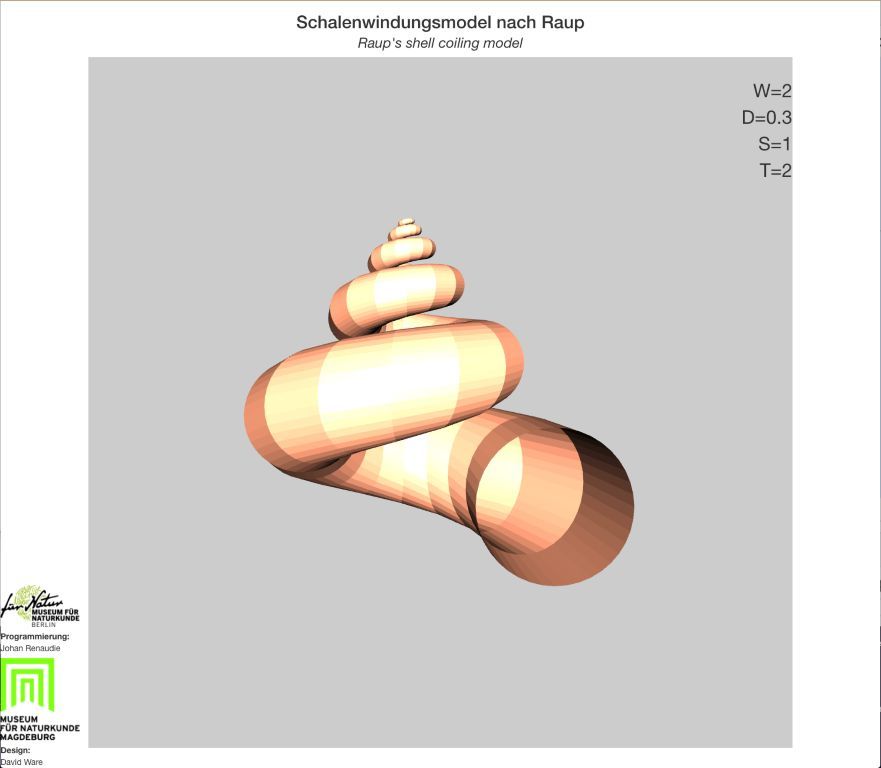
Raup permet de comprendre comment une variation géométrique transforme une coquille, sans prétendre expliquer à lui seul pourquoi l’évolution a retenu telle forme plutôt que telle autre.
Et cela permet de faire comprendre très simplement pourquoi le modèle de Raup est si puissant : il ne décrit pas seulement une forme finale, il décrit un processus qui fabrique cette forme au fur et à mesure de la croissance.